BRAIN SCIENCE
临床文献
TMS-EEG刻画新发帕金森病运动皮层网络兴奋性与连接性变化
一、背景
帕金森病(PD)的运动障碍被认为源于黑质纹状体变性,导致基底节-丘脑-皮层网络的功能活动异常。这些改变引起异常的皮质-纹状体传递,导致基底节对投射至运动区域的运动丘脑的抑制净效应增强。这一过程被认为会改变运动皮层区域的兴奋性,可能进而导致运动迟缓——帕金森病的核心体征之一。然而,尽管已有大量研究,这些运动皮层改变在帕金森病中的病理生理学意义及其与行为学指标的相关性仍不明确。
评估人类运动皮层激活的一种新方法是经颅磁刺激联合脑电记录(TMS-EEG)。该技术通过记录TMS诱发电位(TEPs),以高时间分辨率直接探测皮层区域的兴奋性和连接性。TEPs表现为TMS脉冲后约300ms内出现的一系列正相和负相成分。TEPs能够全面反映受刺激区域在其功能网络内局部兴奋性与有效连接性之间的相互作用。在我们既往的一项TMS-EEG研究中,观察到中晚期帕金森病患者初级运动皮层(M1)兴奋性降低,而前辅助运动区(pre-SMA)兴奋性升高。值得注意的是,在这些患者中,M1兴奋性的变化与临床评估的运动迟缓严重程度相关,且M1和pre-SMA的变化均可被多巴胺能药物所纠正。此外,运动皮层的TEPs反映了通过皮质-基底节-丘脑-皮层环路的往返传播,提示TEP异常可能代表继发于基底节功能障碍的皮层改变。然而,仍有若干问题尚不明确,阐明这些运动皮层变化的潜在机制及其临床意义,将有助于加深我们对帕金森病病理生理学的理解。
本研究的第一个目的是确定M1和pre-SMA的兴奋性改变在帕金森病早期阶段、多巴胺能药物治疗开始之前是否已经显现,以及这些改变是否与运动迟缓相关。第二个目的是探究帕金森病的TEP改变是否反映在病理生理学相关的白质纤维束结构异常上。为实现第一个目的,我们比较了早期、未服药帕金森病患者(“新发”PD)与健康对照组(HC)的M1和pre-SMA的TEPs,同时检验了TEP改变与手指敲击运动中运动迟缓的客观运动学指标之间的相关性。针对第二个目的,我们采用弥散张量成像(DTI)评估了皮层-皮层下连接的结构完整性,并探究了DTI改变与TEP异常之间的潜在相关性。
二、患者与方法
参与者
我们招募了28例新发帕金森病患者(男性18例,中位年龄57岁,范围43-81岁),以及28例年龄和性别匹配的健康对照者(男性19例,中位年龄60岁,范围42-77岁)(表1A)。患者招募自意大利罗马大学人类神经科学系运动障碍门诊。研究方案经机构审查委员会批准,并按照《赫尔辛基宣言》最新修订版执行。所有患者在参与研究前均签署了书面知情同意书。
患者的入组标准包括:由运动障碍专业神经科医师根据国际标准确诊帕金森病,且未接受过抗帕金森病药物治疗,Hoehn & Yahr(H&Y)分期<II期,临床起病时间≤2年。
排除标准包括:帕金森病以外的神经系统或精神疾病诊断,以及认知功能下降(定义为蒙特利尔认知评估量表(MoCA)评分<26分)。
实验流程
参与者在同一天内完成临床评估、TMS-EEG记录和运动学记录。参与者还需在另一天进行磁共振成像(MRI)扫描,与实验日的间隔为7至14天。
我们重点关注帕金森病患者受累更严重的上肢(临床评估和运动学评估)及其对侧半球(TMS-EEG和运动学记录),并与健康对照者的对应侧(左侧或右侧)进行一对一匹配。具体而言,对于每一例右侧上肢运动迟缓更严重的帕金森病患者,其右侧上肢(及左侧半球)与一名年龄相近、性别相同的健康对照者的对应侧进行匹配;若患者左侧受累更严重,则按同样原则匹配。该匹配方法确保了各组间所评估的左侧和右侧的分布均衡。
临床评估
临床评估内容包括:病程记录、H&Y分期、运动障碍协会统一帕金森病评定量表(MDS-UPDRS)第三部分、蒙特利尔认知评估量表(MoCA)以及非运动症状量表。帕金森病患者受累更严重的上肢定义为MDS-UPDRS第三部分中第3.4项(手指敲击)、第3.5项(手部运动)和第3.6项(手部旋前旋后)评分总和最高的一侧上肢。
TMS-EEG研究
参与者舒适地坐在专为TMS设计的椅子上(EMS,意大利),前臂旋前,放置在扶手上休息;随后指导参与者保持放松,睁眼注视置于70cm外电脑屏幕上的一点(黑色十字)。Magstim SuperRapid刺激器(Magstim公司,英国)连接70mm八字形线圈,施加单脉冲TMS。
“使用神经导航系统(SofTaxic,EMS,意大利),配备光学追踪系统(Polaris Vicra,Northern Digital Inc.,加拿大),在每位参与者的头皮上采集23个标记点。通过非线性拟合将个体大脑重建并配准至蒙特利尔神经学研究所(MNI)标准空间,以实现在所有刺激位点上线圈相对于“热点”的准确定位。
M1的刺激位置为热点,即在对侧第一骨间背侧肌(FDI)中能诱发出最稳定运动诱发电位(MEP)的位置,电流方向为后-前方向。静息运动阈值(RMT)分别针对每侧M1单独定义,即为在连续10次刺激中至少5次能诱发出峰-峰值波幅≥50µV的MEP所需的最小刺激强度。
对于pre-SMA刺激,线圈手柄指向后方,平行于大脑纵裂,中心置于MNI坐标 x=0, y=10, z=68x=0,y=10,z=68 处。线圈方向的选择依据近期研究证据,该方向可确保对pre-SMA具有充分的估计电场覆盖,且相比其他方向能记录到更大的TEPs。
在两个独立的记录环节中,分别于M1或pre-SMA上方,以110% RMT的刺激强度,在连续EEG记录期间随机施加100次TMS脉冲。对于M1刺激,同时通过对侧FDI肌肉的银-氯化银表面电极(以肌腹-肌腱方式排列)记录肌电图(EMG)。EMG信号经带通滤波(10-1000Hz)、放大(×1000)(D360,Digitimer,英国),并以5kHz采样率数字化(CED 1401,Cambridge Electronic Design,英国)。
刺激初级运动皮层(M1)热点区域,可在对侧第一骨间背侧肌(FDI)中能诱发出最稳定运动诱发电位(MEP)的位置,电流方向为后-前方向。静息运动阈值(RMT)分别针对每侧M1单独定义,即为在连续10次刺激中至少5次能诱发出峰-峰值波幅≥50µV的MEP所需的最小刺激强度。
对于pre-SMA刺激,线圈手柄指向后方,平行于大脑纵裂,中心置于MNI坐标 x=0, y=10, z=68x=0,y=10,z=68处。线圈方向的选择依据近期研究证据,该方向可确保对pre-SMA具有充分的估计电场覆盖,且相比其他方向能记录到更大的TEPs。
在两个独立的记录环节中,分别于M1或pre-SMA上方,以110% RMT的刺激强度,在连续EEG记录期间随机施加100次TMS脉冲。对于M1刺激,同时通过对侧FDI肌肉的银-氯化银表面电极(以肌腹-肌腱方式排列)记录肌电图(EMG)。EMG信号经带通滤波(10-1000Hz)、放大(×1000)(D360,Digitimer,英国),并以5kHz采样率数字化(CED1401,Cambridge Electronic Design,英国)。
EEG通过32个被动电极记录,电极安装在TMS兼容帽(BrainCap, EASYCAP, Germany)上,按国际10-20系统安放,电极位点包括:Fp1, Fp2, Afz, F7, F3, Fz, F4, F8, FC5, FC1, FCz, FC2, FC6, T7, C3, Cz, C4, T8, TP9, CP5, CP1, CP2, CP6, TP10, P7, P3, Pz, P4, P8, O1, O2, Iz。所有电极以Fpz为地线,以POz为在线参考电极。各通道阻抗维持在5kΩ以下。EEG信号经DC-2.5kHz带通滤波,以10kHz采样率通过TMS兼容系统(NeurOne, Bittium Corporation, Finland)数字化。
为减少听觉污染,受试者佩戴隔音耳罩(信噪比=30),耳罩内置耳机持续播放掩蔽声音以掩盖TMS的“咔嗒”声。为减少TMS点击的骨传导及线圈在头皮上的振动感,在线圈下方放置了一层0.5cm厚的泡沫垫。
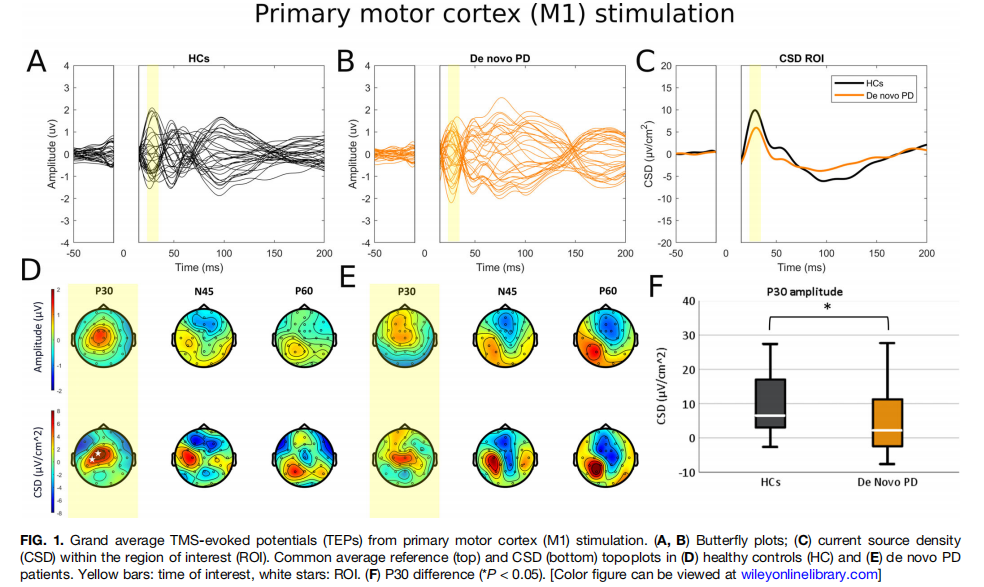
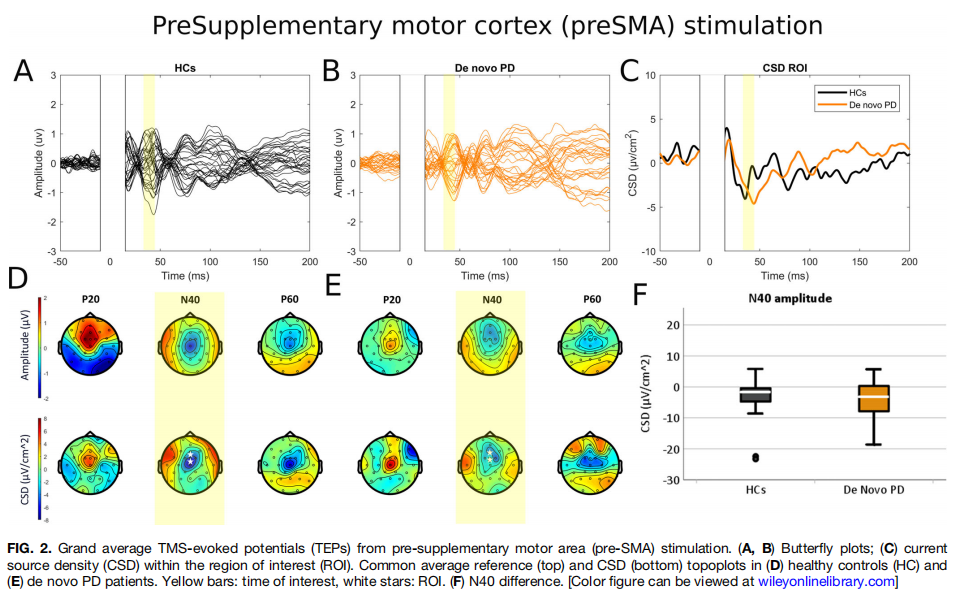
TMS-EEG信号预处理按照我们既往研究的方法进行,使用EEGLAB和TMS-EEG Signal Analyser开源MATLAB工具箱。信号预处理步骤详见补充材料。将清理后的TMS-EEG数据段通过CSD开源工具箱转换为无参考的电流源密度估算值。最终的TEPs通过对每个数据段内的TMS-EEG数据段进行平均获得。鉴于本研究旨在表征既往研究中发现的皮层异常,我们聚焦于既往研究中显示PD患者与健康对照者之间以及多巴胺能药物关期与开期之间存在差异的感兴趣区域和感兴趣时间窗。基于此,M1刺激后的P30波幅在C3和FC1电极平均TEP的23-33ms峰值处测量;pre-SMA刺激后的N40波幅在Fz和Afz电极平均TEP的34-44ms处测量。
运动学评估
运动学记录采用光电系统(SMART motion system, BTS Engineering),配备三台红外摄像机。该系统追踪附着于参与者手部的五个反光标记点的运动,实现三维手部运动的测量。
参与者执行手指敲击任务,被要求以尽可能大幅度、尽可能快速的方式,用食指重复敲击拇指。反光标记点附着于食指指尖和拇指指尖,另在第二掌骨头端及基底部和第五掌骨基底部处增设标记点。正式记录前进行一次预试验。数据采集包括三次15秒的手指敲击任务,期间穿插60秒休息以减轻疲劳。
使用专用软件工具(SMART Analyzer, BTS Engineering)量化重复手指敲击任务中的平均幅度、平均速度以及幅度和速度的递减(即序列效应),分析方法参照既往研究。
MRI研究
在MRI采集期间,指导参与者放松休息以避免运动伪影。所有参与者均在3T扫描仪(Siemens Magnetom Verio)上接受标准化MRI扫描方案,采用12通道头部线圈,配置并行成像技术(广义自动校准部分并行采集)。
获得的MRI序列包括:
(a) 高分辨率3D T1加权磁化准备快速梯度回波序列:重复时间(TR)=1900ms,回波时间(TE)=2.93ms,翻转角=9°,视野(FOV)=260mm,矩阵=256×256,176层连续矢状位图像,层厚1 mm;
(b) 双回波涡轮自旋回波质子密度及T2加权像:TR=3320 ms,TE=10/103 ms,FOV=220mm,矩阵=384×384,25层轴位图像,层厚4mm,层间距30%;
(c) 弥散张量成像单次激发平面回波自旋回波序列:10个b=0(b0)体积和64个梯度方向穿插采集,TR=4600ms,TE=78 ms,多波段加速因子=2,单极弥散方案,FOV=192mm,矩阵= 96×96,b值=1000s/mm²,72层连续轴位图像,层厚2mm。
一位资深放射科医师(P.P.)对所有MRI图像进行了审查,以排除合并脑部病变及局灶性T2白质高信号。结构像预处理使用FMRIB软件库(FSL,版本6.0.5.1)进行。弥散数据经视觉检查排除伪影后,使用FDT中的不同工具进行预处理。图像经涡流畸变校正和头动校正(采用12参数仿射配准,将每例受试者的图像配准至其首个无弥散加权像体积),并根据配准结果对梯度方向进行相应旋转。使用脑提取工具从涡流校正后的图像中去除非脑组织,生成脑组织二值掩膜。随后,使用DTIFIT工具,通过向涡流校正及脑掩膜处理后的弥散数据拟合张量模型,在个体水平估算各向异性分数(FA)、平均弥散率(MD)、轴向弥散率(AD)和径向弥散率(RD)图谱。弥散空间、结构空间和标准空间图像之间的配准在FDT内完成。建立变换矩阵及其逆矩阵,用于图像在不同空间之间的转换。
为重建皮层与皮层下结构之间的白质纤维束,我们定义了感兴趣区。我们预先决定将DTI分析局限于帕金森病中最可能导致pre-SMA和M1水平TEP改变的皮层-皮层下纤维束。我们研究了pre-SMA与前壳核之间的结构连接,因为帕金森病中pre-SMA的过度激活与该区域连接增强有关,而pre-SMA主要投射至该区域。由于帕金森病中M1的低激活可能继发于多巴胺能去神经支配导致的丘脑-皮层输出减少,我们还研究了腹外侧前丘脑核(Vla)——基底节的主要输出核团与M1之间的结构连接。
我们还选择感兴趣区以重建一条连接初级视觉皮层(V1)与丘脑枕核的对照纤维束。纳入这一非运动对照纤维束,是为了验证运动纤维束DTI改变与运动区TEP之间可能存在的相关性是否具有特异性。
皮层感兴趣区采用以参考MNI坐标为中心的12mm半径球体创建。pre-SMA(x=0, y=10, z=68)球体以TMS刺激位点为中心,随后在正中矢状面x = 0处分为左侧和右侧两个区域。对于每个感兴趣区,我们选择帕金森病患者受累更严重的一侧(即运动迟缓更严重上肢的对侧),并与健康对照者的对应侧进行匹配。对于M1感兴趣区,我们根据Chris Rorden描述的方法确定手部区域(左侧:x=-34, y =-22, z=52;右侧:x=34, y=-22, z=52)。V1的中心根据既往研究选取(左侧:x=-8, y=-76, z=10;右侧:x=8, y =-76, z=10)。左侧和右侧壳核感兴趣区选自哈佛-牛津皮层下结构图谱。壳核的前部通过沿与前连交相交的冠状面分割壳核获得。丘脑核团(腹外侧前丘脑核和丘脑枕核)使用多图谱分割技术为每例受试者(在结构空间中)获取。
最后,皮层和皮层下区域通过先前生成的配准参数从标准空间或结构空间转换至弥散空间,并进行视觉检查以确认准确性。
使用BedpostX在每例受试者的弥散空间内进行概率纤维追踪。我们在每个预定义的皮层下感兴趣区与皮层感兴趣区之间生成流线概率分布图。在每张重建图中,我们将皮层下区域设为种子区,皮层区域设为目标区,对侧半球设为排除掩膜。同时将皮层目标区设为终止掩膜,以识别给定种子区与目标区之间唯一且精确的连接。通路概率图通过将概率图除以成功生成的流线总数进行种子区大小归一化,并通过5%阈值去除虚假连接。阈值化后的概率图随后被二值化,并叠加于各向异性分数(FA)、平均弥散率(MD)、轴向弥散率(AD)和径向弥散率(RD)的个体图谱上,从中提取平均值用于后续统计分析。
统计分析
采用非配对t检验比较两组间的年龄差异,采用卡方检验比较两组间的性别分布。采用Mann-Whitney U检验评估新发帕金森病患者与健康对照者之间TEP波幅(M1 P30、pre-SMA N40)的差异。采用Mann-Whitney U检验比较新发帕金森病患者与健康对照者之间各纤维束的运动学指标(平均幅度、平均速度、幅度序列效应、速度序列效应)和DTI参数(各向异性分数、平均弥散率、轴向弥散率和径向弥散率)。采用Spearman相关系数探究帕金森病组内TEP波幅(M1 P30、pre-SMA N40)与MDS-UPDRS第三部分总分、受累更严重上肢的运动迟缓子项评分,以及与两组间存在显著差异的运动学指标和DTI特征之间的可能相关性。结果以 P<0.05为具有统计学显著性。对运动学、DTI及相关性检验的多重比较采用错误发现率(FDR)校正。
我们使用G*Power对TEPs的组间比较(采用Mann-Whitney U检验)进行了效能分析,效应量基于既往研究估计为M1是0.7、pre-SMA是0.8。设定 α=0.05,效能为0.8,分析确定所需样本量为M1 28例、pre-SMA 21例。
三、结果
临床与人口学特征
全部28例新发帕金森病患者及28例健康对照者均完成了TMS-EEG研究(表1A)。年龄和性别分布分析显示两组间无显著差异。
此外,20例新发帕金森病患者和20例健康对照者同时完成了运动学记录和MRI研究(表1B)。同样,完成运动学和MRI研究的亚组之间年龄和性别分布无显著差异。
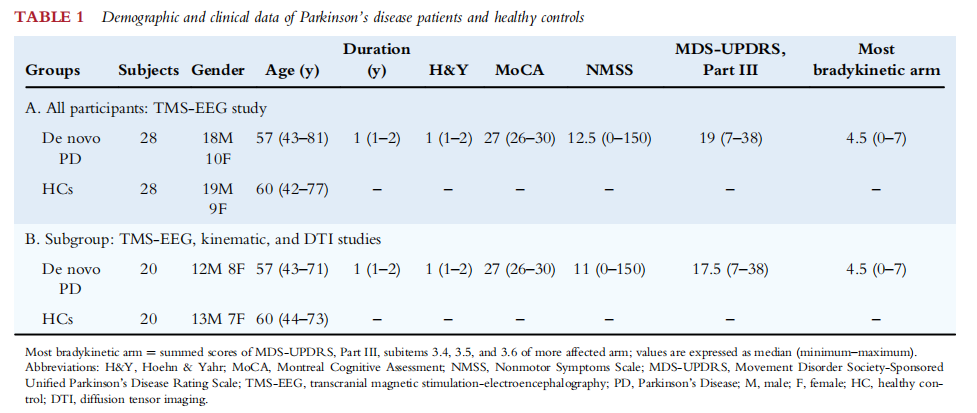
所有参与者均为右利手。根据帕金森病患者的受累更严重侧,15例帕金森病患者和15例健康对照者研究右侧上肢(即左侧半球),13例患者和13例健康对照者评估左侧上肢。
TMS-EEG
在M1刺激条件下,新发帕金森病患者较健康对照者表现出显著更小的P30波幅中位数(2.17vs. 6.53µV, U=234, P=0.01)。剔除健康对照组中超过均值三个标准差以上的离群值后,组间比较仍具有统计学显著性(2.17vs. 6.33µV, U=234, P=0.015)(图1)。
相比之下,在pre-SMA刺激条件下,新发帕金森病患者与健康对照者之间的N40波幅中位数无显著差异(-3.22vs. -1.61 µV, U=352, P=0.512)。剔除健康对照组中超过均值三个标准差以上的离群值后,结果不变(-3.22vs. -1.65µV, U=352, P=0.662)(图2)。
运动学分析
与健康对照者相比,新发帕金森病患者表现出显著更低的平均幅度中位数(79.7vs. 39.9度, U=33, FDR校正 P<0.001)和平均速度中位数(714.6vs. 373.3度/秒, U=30, FDR校正 P<0.001),以及显著更高的幅度序列效应(-0.10vs. -0.69度/运动次数, U=66, FDR校正 P<0.001)和速度序列效应(0.48vs. -5.24 度/秒/运动次数, U=70, FDR校正 P<0.001)。
弥散张量成像
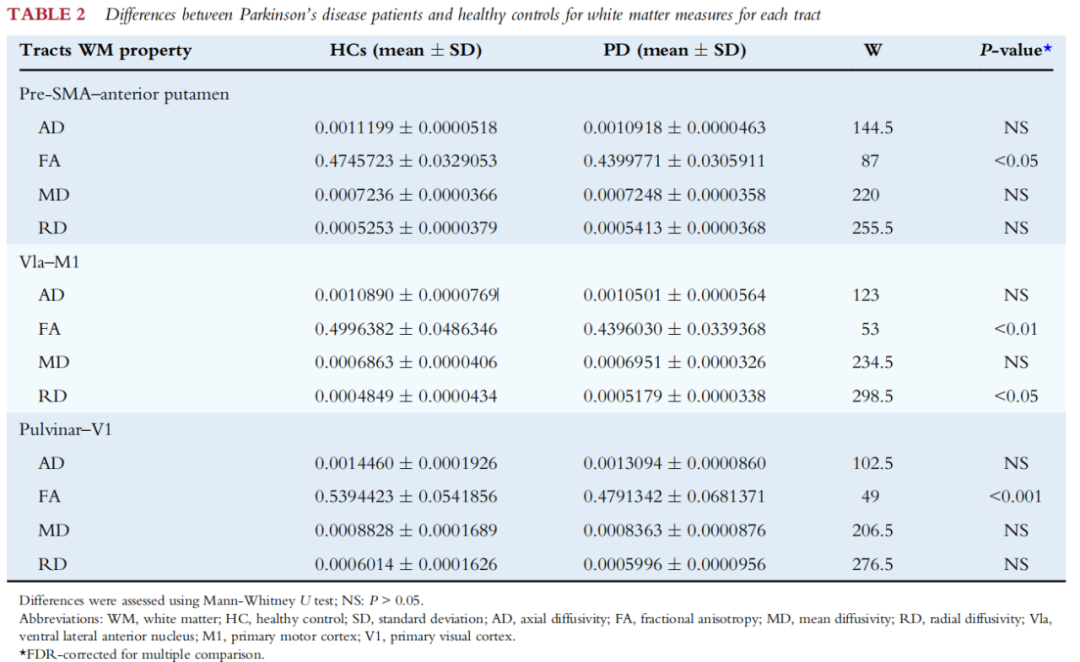
帕金森病患者在所有重建的白质纤维束(腹外侧前丘脑核-M1、前辅助运动区-前壳核、丘脑枕核-初级视觉皮层)中均表现出显著更低的各向异性分数值,且在腹外侧前丘脑核-M1纤维束中径向弥散率显著升高。在所研究纤维束的平均弥散率和轴向弥散率值方面,未发现显著的组间差异(表2)。
TEP相关性
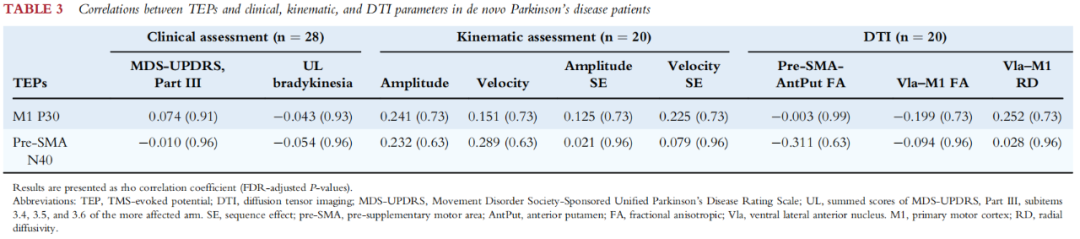
我们未发现M1刺激诱发的TEP P30或pre-SMA刺激诱发的TEP N40与临床指标、运动学指标及DTI指标之间存在显著相关性(表3)。
四、讨论
本研究采用TMS-EEG技术探究了早期、未服药帕金森病患者的M1和pre-SMA兴奋性及其与临床、行为和结构连接的相关性。在对受累更严重侧对侧的M1进行TMS刺激时,新发帕金森病患者表现出较健康对照者更低的TEP P30波幅。在pre-SMA刺激条件下,新发帕金森病患者与健康对照者的TEP N40波幅相似。运动学分析显示,与健康对照者相比,新发帕金森病患者手指敲击运动的幅度更小、速度更慢。结构MRI连接分析揭示了新发帕金森病患者与健康对照者在以下纤维束中存在显著差异:连接M1与腹外侧前丘脑核的纤维束、连接pre-SMA与前壳核的纤维束,以及丘脑枕核至V1的对照纤维束。M1 P30波幅和N40波幅与任何临床、运动学或DTI指标均无显著相关性。
总体而言,本研究结果表明:帕金森病中M1兴奋性改变在运动症状首次出现时即已存在,而pre-SMA的异常过度激活尚未出现。运动皮层兴奋性改变与运动迟缓或病理相关的皮层-皮层下纤维束结构改变无显著相关性。
本研究的第一项结果是:新发帕金森病患者M1刺激诱发的TEP P30波幅降低。新发帕金森病患者M1 P30波幅的降低提示,运动皮层兴奋性功能障碍在帕金森病早期阶段即已存在。这一结果扩展了我们课题组既往的发现——中晚期帕金森病患者同样表现为M1 P30降低,且该变化受多巴胺能药物治疗调节。运动学分析显示,新发帕金森病患者的手指敲击运动较健康对照者幅度更小、速度更慢,且序列效应更为显著。我们还发现,M1 TEP改变与临床及客观测量的运动迟缓之间无显著相关性。这一相关性的缺失并非由于本研究患者运动障碍程度较轻,因为我们的结果与既往研究一致表明,运动迟缓的不同特征(如序列效应)在疾病早期即已显现,甚至可能更为突出。
M1兴奋性(以TEPs评估)与序列效应之间缺乏相关性,这一结果拓展了既往的研究发现——既往研究同样报告序列效应与皮质脊髓兴奋性(以MEPs评估)之间无相关性。因此,局部M1兴奋性和皮质脊髓兴奋性似乎均不直接参与序列效应的病理生理机制。TMS诱导的M1激活减弱可能反映了帕金森病中该皮层区域在运动不能状态与帕金森状态之间转换受损的相关表现。结合深部脑刺激的TMS研究提出,M1激活受损的神经生理机制源于通过超直接通路异常募集丘脑底核,值得注意的是,P30的潜伏期与通过TMS激活超直接通路所募集的皮质-基底节-丘脑-皮层环路相吻合。然而,需注意TEPs是在静息状态下记录的,而运动迟缓的机制可能在运动的准备和执行阶段得到更好的体现。这一可能性或可解释TEP指标与运动迟缓之间缺乏相关性的原因。
我们观察到新发帕金森病患者与健康对照者之间pre-SMA N40波幅无显著差异。这一发现拓展了既往在中晚期帕金森病患者中观察到的N40波幅增大的研究结果,提示pre-SMA兴奋性增高可能在疾病较晚期阶段才出现。然而,鉴于两项研究的数据均为横断面设计,我们只能对pre-SMA兴奋性改变与帕金森病进展之间的关系进行推测。此外,既往pre-SMA兴奋性增高的发现可能受到样本量较小的影响,存在假阳性的可能性。未来研究需采用更大样本量和纵向设计,以确认pre-SMA兴奋性增高是否与帕金森病晚期阶段相关,以及其在运动障碍中发挥的是病理作用还是代偿作用。
本研究的第二项发现涉及帕金森病的TMS-EEG异常是否反映白质纤维束的结构连接改变(以DTI评估)。运动皮层区域的TEPs反映了经皮质-基底节-丘脑-皮层环路往返传播的皮层激活及其传导。TMS可能通过单突触投射激活基底节结构,并通过丘脑经多突触通路返回至皮层区域。采用脑深部电刺激联合EEG的研究表明,刺激丘脑底核和苍白球内侧部可分别产生起始潜伏期约15ms和11ms的EEG电位,提示通过TMS激活皮质-皮层下-皮层环路可能促成早至20ms的TEPs。在我们的分析中,重点关注丘脑-M1连接,因为丘脑是该环路的主要输出核团,且被认为是基底节功能障碍导致M1低激活的基础。针对帕金森病pre-SMA的TEPs,我们重点关注pre-SMA与前壳核之间的连接,这是pre-SMA的主要输出通路,且已发现在帕金森病中功能上呈共同过度激活。
研究发现,帕金森病患者在连接腹外侧前丘脑核与M1、pre-SMA与前壳核的纤维束中,以及丘脑枕核至V1的对照纤维束中,均表现出各向异性分数降低,提示存在微结构改变。此外,帕金森病患者在腹外侧前丘脑核-M1纤维束中表现出径向弥散率升高,提示白质病理改变存在差异模式。这些结果与既往研究一致。
然而,本研究发现M1和pre-SMA的TEP改变与DTI异常无显著相关性,提示以TEPs测量的皮层兴奋性改变不能严格归因于所研究的白质纤维束结构连接改变。因此,帕金森病的TEP异常可能反映的是皮层内改变,或皮质-皮层下环路内功能连接的改变。但本研究结果并不排除TEP改变可能反映其他未检测通路的结构连接损害。
我们承认本研究存在一定局限性。本研究在静息状态下而非手指敲击任务期间记录TEPs,因此可能忽略了TEPs的潜在变化及其与运动迟缓的相关性。尽管在新发帕金森病患者的入组中存在误诊风险,但后续临床随访已确认了这些患者的帕金森病诊断。
总之,本研究揭示了帕金森病皮层兴奋性改变的机制及其临床相关性。研究发现,M1低兴奋性在疾病起病时即已存在,而pre-SMA高兴奋性则尚未出现。我们认为,M1的改变反映的是帕金森病皮层的状态特征,而非与运动迟缓特异性相关的改变,并推测pre-SMA的改变可能在疾病较晚期阶段才出现。未来开展纵向研究将有助于评估帕金森病疾病进展和长期治疗过程中M1及pre-SMA兴奋性的动态变化。
Leodori G, De Bartolo MI, Piervincenzi C, et al. Mapping Motor Cortical Network Excitability and Connectivity Changes in De Novo Parkinson's Disease.Mov Disord. 2024;39(9):1523-1532. doi:10.1002/mds.29901